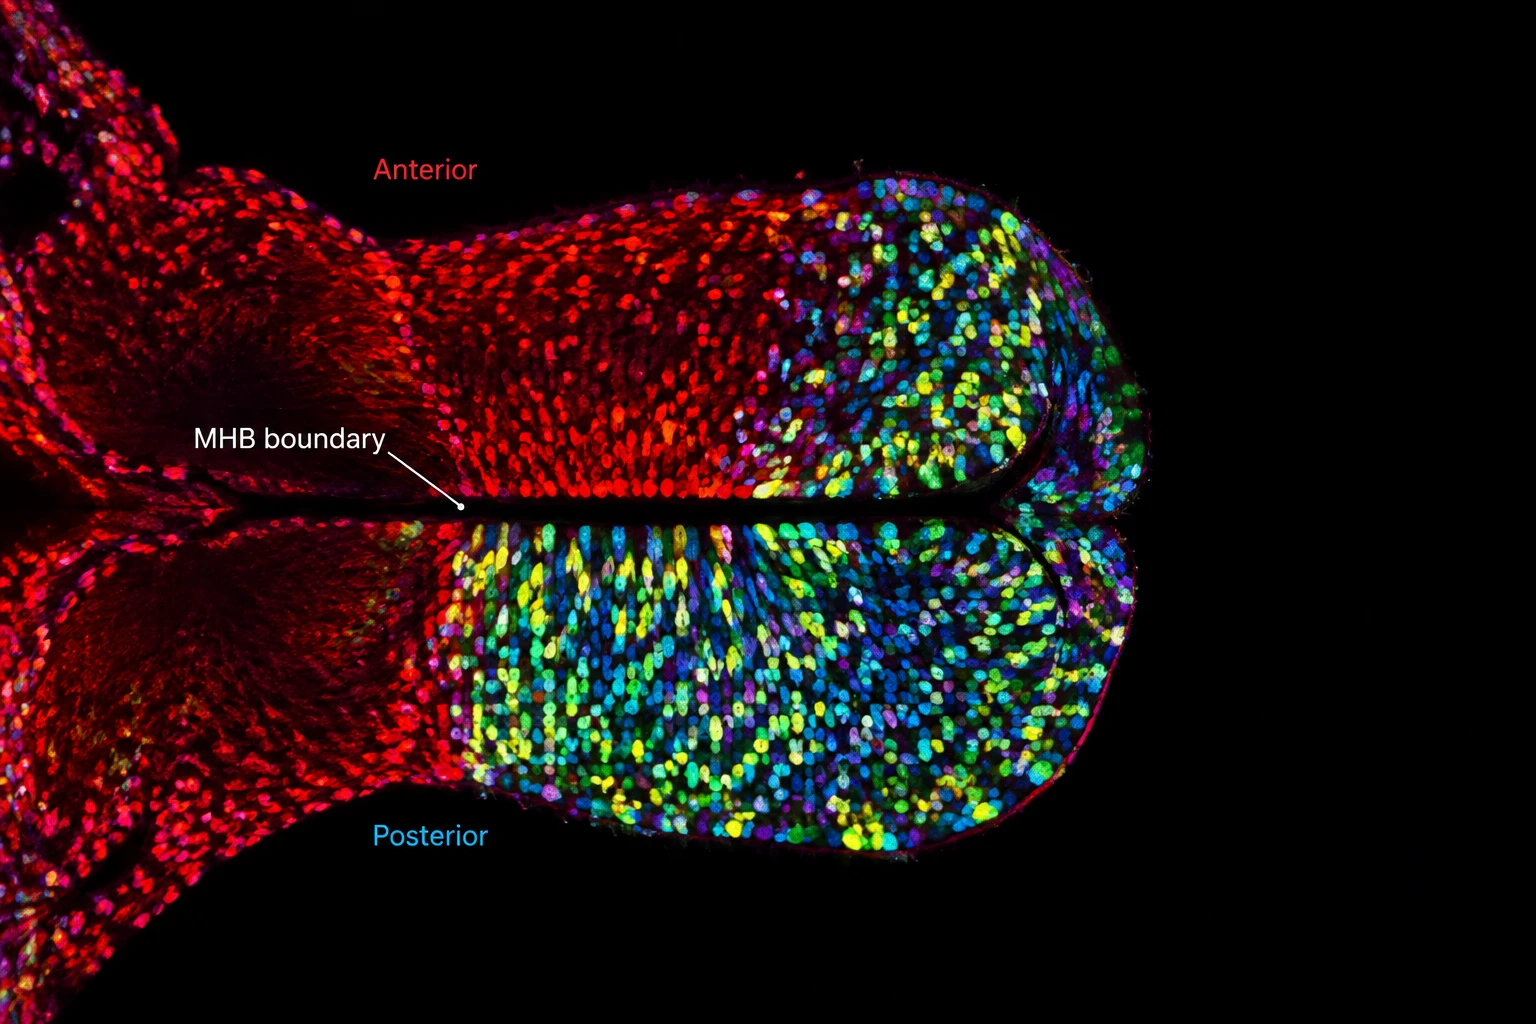
Stanford Medicine 团队近日在 Nature Neuroscience 发表研究,利用 494 个单细胞克隆示踪技术,推翻了沿用近百年的大脑发育经典假设。研究证实,人类大脑前部与后部并非由同一根均质神经管自前向后分化而来,而是源自原肠胚期表观遗传上相互独立的两组前体细胞。
这意味着,人脑在演化与发育机制上并不是一个单独成型的器官,更像是由两套完全独立的生物构造在胚胎期缝合而成的复合体。这一结论并不意味着大众猎奇所谓的双脑人,而是发育生物学在细胞谱系层面的地基调整。它直接推翻了经典发育学里的激活-转化假说,也解释了为什么多年来针对脑干核团的疾病模型在体外分化时频频失效。
494个细胞克隆改写神经管分化教条
过去几十年的神经发育学受 Nieuwkoop 激活-转化假说主导。该理论假设神经外胚层在胚胎早期先默认获得前脑表型,随后在 Wnt、FGF 和视黄酸等向后信号梯度的诱导下,逐步被转化为中脑、脑干与脊髓。这一推论把脑干视作前脑组织的次级衍生品。
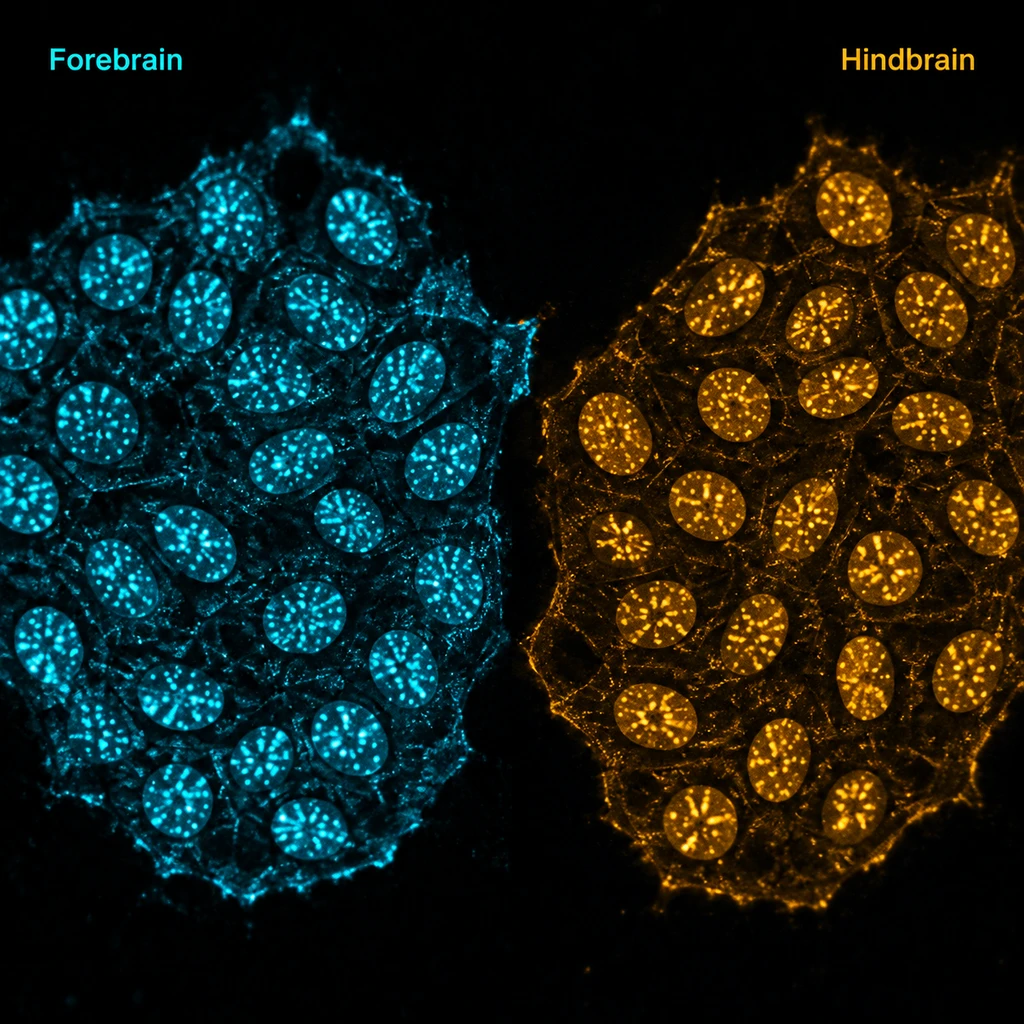
Stanford 团队采用了高通量条形码标记技术,对 494 个独立人类多能干细胞克隆展开全谱系追踪,并比对单细胞染色质可及性数据。结果显示,负责形成菱脑节(即未来的脑桥、延髓等后脑结构)的前体细胞,在分化极早期就锁定了独立的转录调控网络,从未经历过所谓的前脑中间态。
| 比较维度 | 经典单一起源假说(激活-转化模型) | Stanford 团队复合器官模型 |
|---|---|---|
| 发育起点 | 均质神经外胚层,默认全为前脑基底 | 原肠胚期两组表观遗传预设独立的细胞群 |
| 区域化动力 | 依赖浓度梯度信号做自前向后的次级转化 | 前后脑谱系在早期各自激活专属主控转录因子 |
| 脑干位置属性 | 大脑主体向下延伸的管状轴心结构 | 独立起源的后部器官,后期在解剖上与前脑愈合 |
| 培养皿诱导痛点 | 假设同一套通用梯度诱导可连续生成前后脑 | 前后脑发育微环境互斥,混养极易导致特异性丢失 |
两组组织不仅起点不同,其染色质开放状态与调控逻辑也完全平行。人类头颅里包裹的实质上是一个负责感知与高级认知的上游前脑,加一个负责呼吸、心血管调节与内脏中枢的独立后脑。
药研管线脱靶与渐冻症建模的底层校正
这个基础研究变化最先冲击的是工业界与临床转化团队。长期以来,类脑器官(Brain Organoid)研发默认用单一套路的形态发生素梯度诱导全脑组织,导致后脑神经元的体外表型经常与真实人体严重不符。
最直接受影响的第一个群体是中枢代谢药物研发团队。司美格鲁肽等 GLP-1 受体激动剂能够降低食欲,其核心中枢靶点位于脑干后区(Area Postrema)和孤束核。很多药企在早期体外化合物筛选中,习惯用泛神经前体细胞诱导出的类脑模型测定亲和力,结果体内动物实验与体外数据经常出现断层。Stanford 的发现明确指出,脑干细胞有自身独特的表观分化轨迹,必须建立专用的后脑谱系模型,否则早期筛选就是在测假靶标。
第二个受波及的是肌萎缩侧索硬化(ALS)和脊髓性肌萎缩症(SMA)的科研人员。这两类疾病中,延髓运动神经元衰竭直接导致球麻痹,引发吞咽和呼吸衰竭。以往试图通过干细胞分化特定运动神经元进行体外病理建模时,细胞电生理特征脆弱且难以存活。原因正是用前脑诱导路径培育后脑细胞,表观遗传标记从源头上就产生了错位。
区分机制认知与临床现实的鸿沟
对患者与家属而言,需要认清这项发现的真实边界。学术机构通稿中出现的两个独立器官这类概念,描述的是胚胎演化与发育学属性,并不代表成体脑功能分裂,更不代表截瘫或脑干损伤可以通过拼装器官来修复。
这项研究的边界同样客观存在。494 个克隆的示踪主要基于体外多能干细胞分化体系,虽然染色质分析提供了强佐证,但人胚胎在子宫内的力学受限与母体复杂微环境,依然可能对细胞谱系产生额外调控。
眼下最现实的变化不在医院病房,而在药企的研发预算分配。从事神经退行性疾病和代谢靶点开发的团队,接下来最需要做的一件事,是重审现有的类脑器官构建方案,将前后脑分离培养写入标准作业程序,而非继续在单一均质化的模型里浪费试剂与周期。