长期以来,通俗科学界习惯将人类智力演化描述为一场不断获得特异性突变的攀登史。但瑞典隆德大学发表在《Science Advances》上的一项最新分子生物学研究,呈现了一个完全相反的演化图景:人类大脑之所以在体积与神经连接复杂度上显著超越近亲黑猩猩,核心契机可能并非人类祖先获得了某种罕见的智能升级基因,而是黑猩猩被一种名为 PTERV1 的远古逆转录病毒削弱了发育潜力。
这项研究利用体外脑类器官模型证实,黑猩猩基因组因整合该病毒而引发了关键非编码基因的表观遗传沉默。人类引以为傲的复杂大脑结构,在很大程度上更像是一场避开远古病毒劫难后的幸存者红利。这一发现重塑了我们对物种分化动力的理解,但体外培养皿里的微观生长停滞,与宏观智力之间的真实距离依然十分遥远。
远古病毒踩下刹车:PTERV1诱发的减损模型
人类与黑猩猩的基因组蛋白质编码序列相似度超过98%,单纯的单核苷酸突变早已无法解释为何人类大脑体积能达到黑猩猩的约三倍,且突触连接密度呈现量级跃升。科学界的目光近年来转向了非编码调控区与转座子。当外源病毒感染灵长类生殖细胞并永久写入基因组,便演化为世代遗传的内源性逆转录病毒(ERV),成为调控宿主基因表达的双刃剑。
隆德大学团队锁定的 PTERV1 属于一种在黑猩猩体内高度富集、却在现代人类基因组中完全缺席的逆转录病毒。当研究团队追溯其功能时发现,该病毒插入黑猩猩19号染色体特定位点后,通过诱导局部甲基化等表观遗传修饰,直接沉默了邻近的长非编码RNA基因 LINC00662。而在未受感染的人类细胞中,这一基因始终保持活跃表达,主导着神经元分化、突起生长与网络连接。
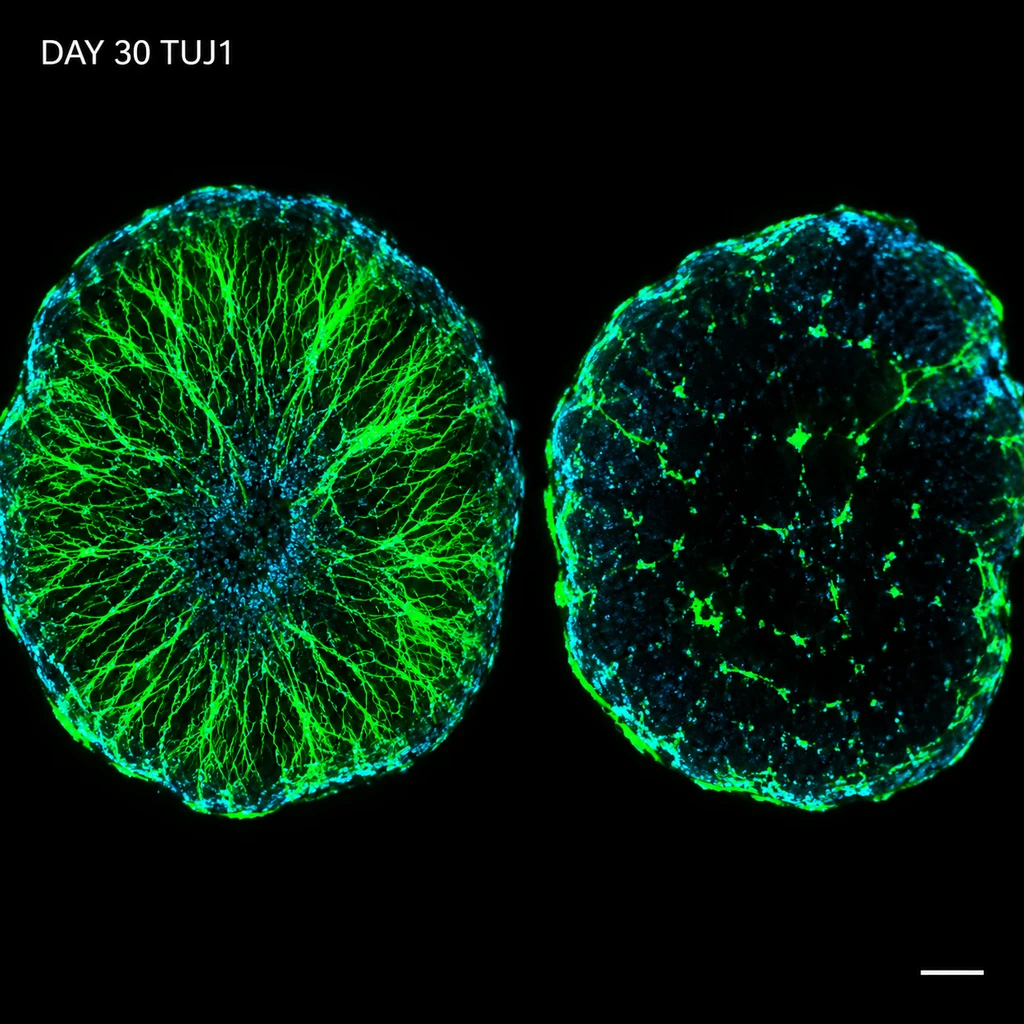
为了验证这一机制的因果性,研究人员在黑猩猩诱导多能干细胞(PT1 iPSC)中利用基因编辑切除 PTERV1 插入序列,成功观察到 LINC00662 转录表达的重新复苏。随后,团队在人脑类器官模型中运用 CRISPRi 技术靶向沉默 LINC00662。表型测试显示,培养至第15天时细胞并未出现显著异常,但推进至第30天的关键发育期时,类器官中间区的 TUJ1 染色信号出现断崖式衰减,神经突起向外延伸的路径受到严重阻碍。
这意味着黑猩猩的大脑发育很可能在几百万年前被踩下了一记急刹车。传统叙事往往假定人类独占演化鳌头是因为跑得更快,而这项研究给出的实证证据表明,真相可能只是另一位竞争者在半途被病毒绊倒。
独立感染潮与未解的免疫之谜
如果 PTERV1 具有如此深远的发育重塑能力,为何人类祖先能够幸免于难?大众报道通常将其草率归结为远古人类祖先的幸运,但在基因组学与古病毒学领域,这段历史充斥着激烈的学界交锋。
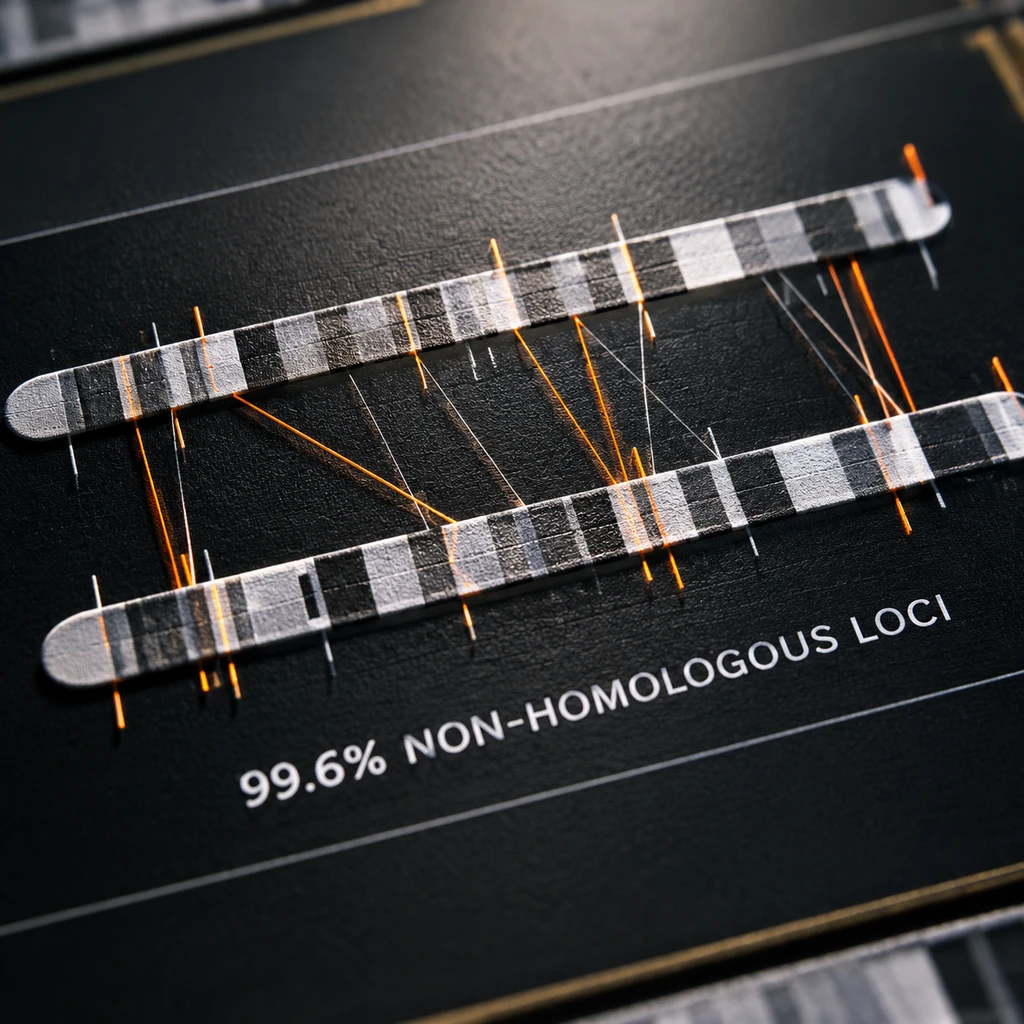
一种常见的误解是该病毒在人猿共同祖先时期就已广泛泛滥。然而对比分析显示,黑猩猩与大猩猩体内的 PTERV1 整合位点有99.6%为非同源位点。这一极高比例直接推翻了共同祖先遗传论,坐实了这并非数千万年前的陈旧感染,而是发生在距今约300万至400万年前、即人猿谱系早已彻底分化之后的一场或数场多次独立发生的外部感染扩增浪潮。
所谓物种的卓越,有时仅仅取决于某场古老疫情在生殖系门前掠过时的方向。
在这场洗劫了非洲类人猿谱系的病毒风暴中,人类祖先基因组未见任何整合痕迹,其成因至今存在重大证据冲突:
- 细胞固有免疫假说.2007年曾有演化生物学学者提出,早期人类的 TRIM5α 抗病毒蛋白发生特定构象改变,成功阻断了 PTERV1 的侵入通道。
- 假说遭遇实验反证.2008年一项基于全长衣壳序列重构远古病毒颗粒的严密实验证实,重组病毒对人类与黑猩猩体内的 TRIM5α 均表现出完全耐药。
分子生物学层面的免疫防御机制至今没有定论。另一种在生态学上更合理的推测是宿主地理隔离,早期古人类支系当时可能生活在与森林猿类完全隔绝的开阔干旱生境,或者仅仅是病毒进入了躯体细胞,却因随机巧合未曾击穿生殖细胞防线,最终没有转化为可遗传的内源序列。基因组不含 PTERV1 并不等同于人类祖先从未得病,它只说明人类没有把这一减损枷锁世代相传。
30天类器官距离人类智能有多远
尽管分子层面的因果闭环设计精巧,但若将该论文直接包装为解答人类为何聪明的通俗答案,则跨越了不可逾越的科研边界。该结论在实验设计上存在几处难以回避的技术限制,读者在理解时必须剥离科普滤镜。
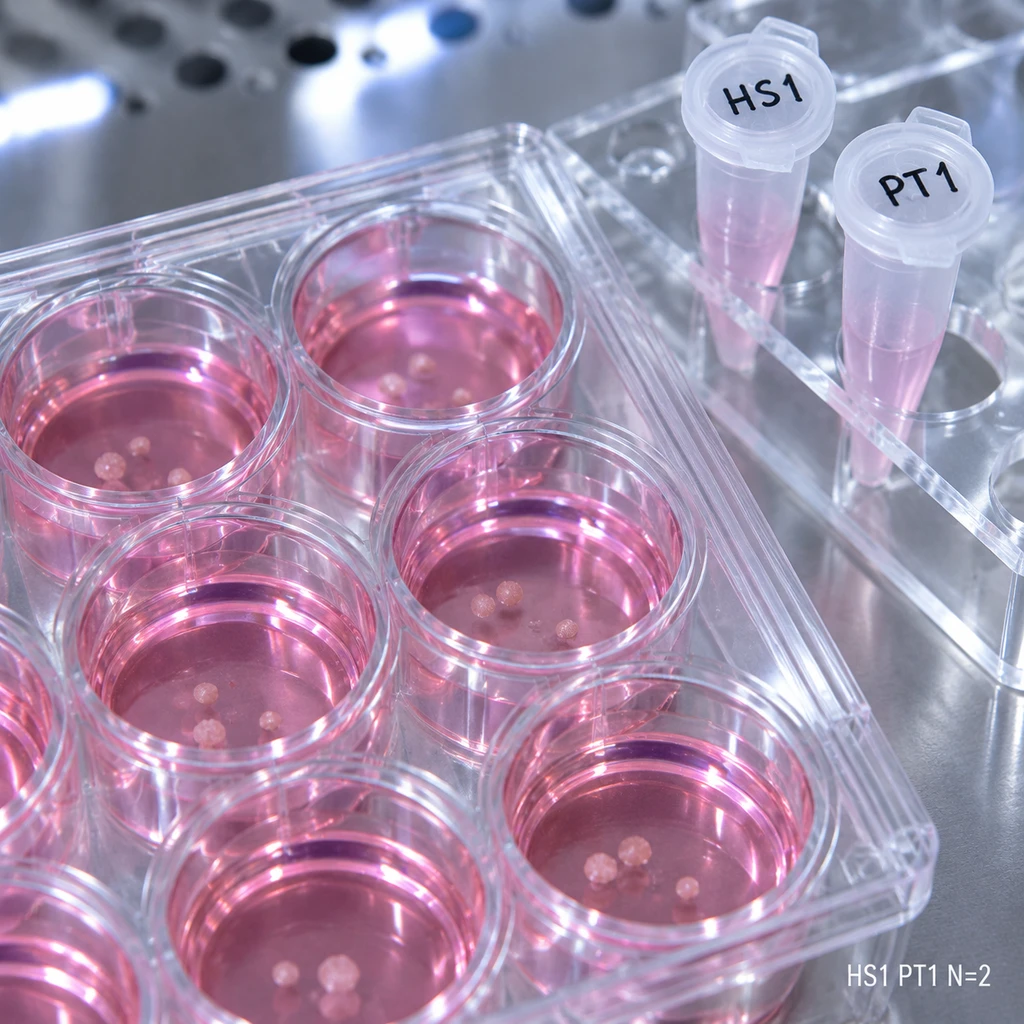
首要变量在于微观的样本规模。这项研究核心的跨物种分子对比,供体样本基数仅为人类与黑猩猩各2名个体(人类 HS1/HS2 与黑猩猩 PT1/PT2)。虽然研究团队在后续流程中通过批次细胞同源扩增,在85个脑类器官中累计解析了119,674个单细胞核转录组,并确立了扎实的统计学显著性,但2个供体的遗传多样性显然不足以代表整个物种。灵长类个体间天然存在的非编码区变异,仍可能对调控强度造成不可控干扰。
更为严峻的断层发生在体外模型与真实生物表型之间。类器官仅能模拟胚胎脑发育极早期的局部生化过程,在缺乏血管化支持、免疫微环境及真实受体结构的状态下,30天的培养窗口只捕捉到了神经突起向外伸展速率的差异。更重要的是,在人脑类器官中敲低 LINC00662 并没有引起整体结构的溃败,类器官的体积和基础细胞增殖未受损伤。
论文第一作者 Patricia Gerdes 在阐述实验成果时保持了克制,明确强调恢复一个基因的转录绝不等于重塑整个人脑的发育形态。牛津布鲁克斯大学的演化遗传学家 Ravinder Kanda 亦在同行评议中指出,病毒插入干扰早期神经生长具有坚实的分子因果,但若将单一基因的表观下调直接外推至宏观大脑体积膨胀、皮层折叠或是复杂认知功能的分化,在逻辑链条上缺乏直接证据。
- 提醒.体外培养皿中观察到的神经突起伸展放缓,属于微观细胞形态学表型,不能被直接等同于现实中黑猩猩宏观脑容量萎缩或行为智力退化。
这项研究的真正价值,不在于给人类智能贴上一个通俗的病毒勋章,而在于研究范式的根本转变。它强有力地证明了,长期被视为垃圾序列的内源性逆转录病毒及其介导的非编码区调控网络,在高级灵长类的演化岔路口上拥有不亚于编码突变的分流力量。面对人类智慧起源这个宏大命题,科学界正在卸下宿命论式的傲慢,承认那些决定性特征的保留,有时纯粹是由几场未曾到访的古老感染所写下的偶然。